Distances et similarités
Cours 5 — Modèles en biologie
L3 GBI — Université d’Évry
Acquis des cours précédents
Matrices et transposée
Matrice \(A\) de taille \(n \times p\) : coefficient \(a_{ij}\) en ligne \(i\), colonne \(j\).
\[ A\mathbf{x} = x_1\,\mathbf{a}_1 + \dots + x_p\,\mathbf{a}_p, \qquad AB = (A\mathbf{b}_1 \ \cdots \ A\mathbf{b}_q) \]
Transposée : \((A^T)_{ij} = a_{ji}\), \(\quad (AB)^T = B^T A^T\).
Chaîne de Markov et vecteur propre
Évolution : \(\mathbf{x}_{t+1} = P\,\mathbf{x}_t\), \(P\) matrice de transition, colonnes de somme 1.
Équilibre : \(P\pi = \pi\), soit \((P - I)\,\pi = \mathbf{0}\) avec \(\sum_i \pi_i = 1\).
Vecteur propre : \(A\mathbf{v} = \lambda\,\mathbf{v}\), \(\mathbf{v} \neq \mathbf{0}\). L’équilibre \(\pi\) : vecteur propre de \(P\) pour la valeur propre 1.
Norme, distance, produit scalaire
\[ \lVert \mathbf{x} \rVert = \sqrt{x_1^2 + \dots + x_p^2}, \qquad d(\mathbf{x}, \mathbf{y}) = \lVert \mathbf{x} - \mathbf{y} \rVert \]
\[ \mathbf{x} \cdot \mathbf{y} = \sum_{i=1}^{p} x_i\, y_i = \mathbf{x}^T \mathbf{y}, \qquad \mathbf{x} \cdot \mathbf{x} = \lVert \mathbf{x} \rVert^2 \]
Pythagore : \(\mathbf{x} \perp \mathbf{y} \Rightarrow \lVert \mathbf{x} + \mathbf{y} \rVert^2 = \lVert \mathbf{x} \rVert^2 + \lVert \mathbf{y} \rVert^2\).
Similarité cosinus et centrage
\[ s(\mathbf{x}, \mathbf{y}) = \frac{\mathbf{x} \cdot \mathbf{y}}{\lVert \mathbf{x} \rVert \, \lVert \mathbf{y} \rVert} \in [-1, 1], \qquad s(\mathbf{x}, \lambda\,\mathbf{y}) = s(\mathbf{x}, \mathbf{y}) \ \ (\lambda > 0) \]
Cauchy-Schwarz : \(\lvert \mathbf{x} \cdot \mathbf{y} \rvert \le \lVert \mathbf{x} \rVert \, \lVert \mathbf{y} \rVert\).
Centrage : \(\mathbf{x} - \bar{x}\,\mathbf{1}\), écart de \(\mathbf{x}\) à sa projection sur \(\mathbf{1}\), orthogonal à \(\mathbf{1}\).
La question des plus proches
Cinq espèces, cinq séquences
A  GTACGAACTCCACCGTCGTT
B  GTACGACCTCGACCGTCGAT
C  GTACGACCACGACCGTGGAT
D  GCATGACCTTCATCTTCGAT
E  GGATGACCTTCATTTGCCAT
Quelles sont les deux espèces les plus proches ?
Séquences illustratives de 20 bases.
Trois représentations d’un organisme
Des mesures : un vecteur de \(\mathbb{R}^p\) (masse, métabolisme, …).
Une séquence : un mot sur l’alphabet \(\{A, C, G, T\}\).
Un ensemble : les gènes exprimés, les espèces observées sur un site.
Représentation À chaque représentation, sa notion de distance.
Distance
Distance
Une fonction positive de deux objets, nulle seulement pour deux objets identiques, symétrique, et qui vérifie l’inégalité triangulaire.
\[ \begin{aligned} &d(x, y) \ge 0, \qquad d(x, y) = 0 \iff x = y \\ &d(x, y) = d(y, x) \\ &d(x, z) \le d(x, y) + d(y, z) \end{aligned} \]
Espace métrique \((E, d)\) : un ensemble \(E\) muni d’une distance \(d\).
Inégalité triangulaire euclidienne
La norme d’une somme est au plus la somme des normes.
\[ \lVert \mathbf{x} + \mathbf{y} \rVert \le \lVert \mathbf{x} \rVert + \lVert \mathbf{y} \rVert \qquad \text{pour tous } \mathbf{x}, \mathbf{y} \in \mathbb{R}^p \]
Démonstration, par Cauchy-Schwarz :
\[ \begin{aligned} \lVert \mathbf{x} + \mathbf{y} \rVert^2 &= \lVert \mathbf{x} \rVert^2 + 2\,\mathbf{x} \cdot \mathbf{y} + \lVert \mathbf{y} \rVert^2 \\ &\le \lVert \mathbf{x} \rVert^2 + 2\,\lVert \mathbf{x} \rVert \, \lVert \mathbf{y} \rVert + \lVert \mathbf{y} \rVert^2 = \bigl(\lVert \mathbf{x} \rVert + \lVert \mathbf{y} \rVert\bigr)^2 \end{aligned} \]
Avec \(\mathbf{x} - \mathbf{y}\) et \(\mathbf{y} - \mathbf{z}\) : \(\ d_2(\mathbf{x}, \mathbf{z}) \le d_2(\mathbf{x}, \mathbf{y}) + d_2(\mathbf{y}, \mathbf{z})\). \(\quad \square\)
Un écart qui n’est pas une distance
\(\delta(x, y) = (x - y)^2\) sur \(\mathbb{R}\) : positif, symétrique, nul seulement si \(x = y\).
\[ \delta(0, 2) = 4 \ > \ \delta(0, 1) + \delta(1, 2) = 1 + 1 = 2 \]
Inégalité triangulaire violée Un détour par 1 raccourcit le trajet de 0 à 2.
Rôle des axiomes
Séparation : distance nulle, objets identiques. Deux séquences différentes ne sont jamais confondues.
Symétrie : l’écart de \(x\) à \(y\) est celui de \(y\) à \(x\).
Inégalité triangulaire : deux objets proches d’un même troisième restent proches l’un de l’autre.
Sans inégalité triangulaire : une dissimilarité, pas une distance.
Trois géométries sur \(\mathbb{R}^p\)
Distances \(d_1\), \(d_2\), \(d_\infty\)
Trois façons d’agréger les écarts coordonnée par coordonnée : leur somme, la racine de la somme de leurs carrés, leur maximum.
\[ \begin{aligned} d_1(\mathbf{x}, \mathbf{y}) &= \sum_{i=1}^{p} \lvert x_i - y_i \rvert \\ d_2(\mathbf{x}, \mathbf{y}) &= \Bigl(\sum_{i=1}^{p} (x_i - y_i)^2\Bigr)^{1/2} \\ d_\infty(\mathbf{x}, \mathbf{y}) &= \max_{1 \le i \le p} \lvert x_i - y_i \rvert \end{aligned} \]
Trois distances pour un même couple
\(\mathbf{x} = (1, 3)\), \(\ \mathbf{y} = (4, -1)\) : \(\ \mathbf{x} - \mathbf{y} = (-3, 4)\).
\[ d_1 = 3 + 4 = 7, \qquad d_2 = \sqrt{9 + 16} = 5, \qquad d_\infty = \max(3, 4) = 4 \]
Toujours : \(d_\infty \le d_2 \le d_1\).
Boules unités
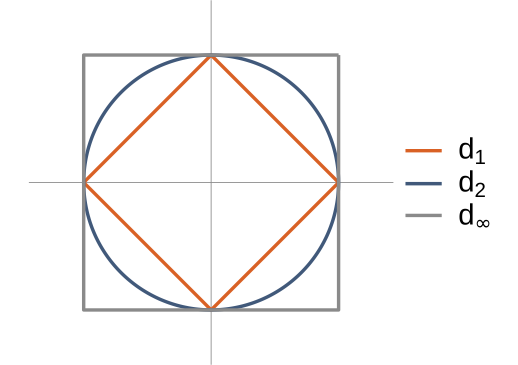
Points à distance 1 de l’origine : losange, cercle, carré.
Distance et géométrie
Choix de la distance Choisir une distance, c’est choisir une géométrie.
\(d_1\) : somme des écarts, variable par variable.
\(d_2\) : écart global, inchangé par rotation des axes.
\(d_\infty\) : pire écart ; une seule variable suffit à éloigner deux individus.
Unités et changement d’échelle
Distances en unités brutes
| Animal | Masse (kg) | Métabolisme (kcal/jour) |
|---|---|---|
| Chèvre | 36,0 | 800 |
| Chimpanzé | 38,0 | 1 090 |
| Mouton | 46,4 | 1 254 |
\(d_2(\text{chimpanzé}, \text{chèvre}) = 290{,}0\), \(\quad d_2(\text{chimpanzé}, \text{mouton}) = 164{,}2\).
Plus proche du chimpanzé : le mouton.
Kleiber, Physiological Reviews, 1947, tableau 2.
Masse en grammes
Chèvre \(36\,000\) g, chimpanzé \(38\,000\) g, mouton \(46\,400\) g.
\(d_2(\text{chimpanzé}, \text{chèvre}) \approx 2\,021\), \(\quad d_2(\text{chimpanzé}, \text{mouton}) \approx 8\,402\).
Plus proche du chimpanzé : la chèvre.
Unités Une convention d’unité décide de la réponse.
Écart-type d’une variable
La dispersion d’une variable : norme de son vecteur centré, divisée par \(\sqrt{n}\).
\[ s_j = \frac{1}{\sqrt{n}}\,\lVert \mathbf{x}^j - \bar{x}_j\,\mathbf{1} \rVert = \Bigl(\frac{1}{n} \sum_{i=1}^{n} (x_{ij} - \bar{x}_j)^2\Bigr)^{1/2}, \qquad \mathbf{x}^j : \text{colonne } j \text{ de } X \]
Même unité que la variable. Tableau de Kleiber (26 groupes) : \(s_{\text{masse}} \approx 163\) kg, \(\ s_{\text{métabolisme}} \approx 2\,453\) kcal/jour.
Réduction des variables
Diviser chaque variable par son écart-type : des nombres sans unité.
\[ x_{ij}^\star = \frac{x_{ij}}{s_j} \]
Grammes ou kilogrammes : \(s_j\) change dans la même proportion, \(x_{ij}^\star\) ne change pas.
Centrer ne change aucune distance : \((\mathbf{x}_i - \mathbf{c}) - (\mathbf{x}_k - \mathbf{c}) = \mathbf{x}_i - \mathbf{x}_k\).
Après réduction : \(d_2(\text{chimpanzé}, \text{chèvre}) \approx 0{,}119\), \(\ d_2(\text{chimpanzé}, \text{mouton}) \approx 0{,}084\). Le mouton, quelle que soit l’unité.
Objets non numériques
Distance de Hamming
Pour deux séquences de même longueur : le nombre de positions où elles diffèrent.
\[ d_H(u, v) = \#\{\, i : u_i \neq v_i \,\}, \qquad u, v \in \{A, C, G, T\}^L \]
A  GTACGAACTCCACCGTCGTT
B  GTACGACCTCGACCGTCGAT
\(d_H(A, B) = 3\).
Hamming, une distance
Positivité, séparation, symétrie : immédiates.
Inégalité triangulaire : là où \(u_i \neq w_i\), forcément \(u_i \neq v_i\) ou \(v_i \neq w_i\).
\[ d_H(u, w) \le d_H(u, v) + d_H(v, w) \]
Génotypes SNP du C1, codés 0, 1, 2 : \(d_1\) compte les allèles différents.
Indice de Jaccard
Pour deux ensembles : la part des éléments communs parmi tous les éléments présents.
\[ J(E, F) = \frac{\lvert E \cap F \rvert}{\lvert E \cup F \rvert}, \qquad d_J(E, F) = 1 - J(E, F) \]
Gènes exprimés : \(E = \{g_1, g_2, g_3, g_4\}\), \(\ F = \{g_3, g_4, g_5\}\).
\(\lvert E \cap F \rvert = 2\), \(\ \lvert E \cup F \rvert = 5\) : \(\ J = 0{,}4\), \(\ d_J = 0{,}6\).
Doubles absences
Deux sites, dix espèces, présence (1) ou absence (0) :
\[ \mathbf{x} = (1, 1, 0, 0, 0, 0, 0, 0, 1, 0), \qquad \mathbf{y} = (1, 0, 0, 0, 0, 0, 0, 0, 1, 1) \]
Accord simple (part des positions identiques) : \(8/10 = 0{,}8\). \(\ \) Jaccard : \(2/4 = 0{,}5\).
Cent espèces de plus, absentes des deux sites : accord simple \(108/110 \approx 0{,}98\) ; Jaccard inchangé, \(0{,}5\).
Jaccard Deux sites ne se ressemblent pas par les espèces qui y manquent.
Similarités et corrélation
Similarité
Une similarité : grande pour des objets proches, maximale pour des objets identiques.
Depuis une distance : \(s = \dfrac{1}{1 + d}\), égale à 1 si \(d = 0\), proche de 0 pour \(d\) grand. Jaccard : \(J = 1 - d_J\).
Similarité cosinus : directement une similarité, dans \([-1, 1]\).
Profils d’expression
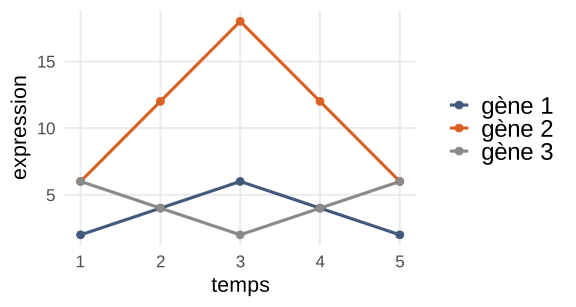
Euclidienne : gène 1 plus proche du gène 3 (\(6{,}9\) contre \(17{,}4\)). Cosinus : plus proche du gène 2 (\(1\) contre \(0{,}75\)).
Profils illustratifs : gène 2 \(= 3 \times\) gène 1.
Profils décalés
\(\mathbf{x} = (1, 2, 3)\), \(\ \mathbf{y} = (11, 12, 13) = \mathbf{x} + 10\,\mathbf{1}\) : même forme.
\[ s(\mathbf{x}, \mathbf{y}) = \frac{74}{\sqrt{14}\,\sqrt{434}} \approx 0{,}95 \]
Cosinus : insensible à un facteur d’échelle, sensible à un décalage.
Remède : retirer le niveau moyen, c’est-à-dire centrer.
Corrélation
Le cosinus des deux vecteurs centrés.
\[ r(\mathbf{x}, \mathbf{y}) = s(\mathbf{x} - \bar{x}\,\mathbf{1},\ \mathbf{y} - \bar{y}\,\mathbf{1}) = \frac{\sum_i (x_i - \bar{x})(y_i - \bar{y})} {\sqrt{\sum_i (x_i - \bar{x})^2}\ \sqrt{\sum_i (y_i - \bar{y})^2}} \]
Variables non constantes : vecteurs centrés non nuls.
Cauchy-Schwarz : \(-1 \le r \le 1\) ; \(r = \pm 1\) pour des vecteurs centrés colinéaires.
Corrélation de profils
\(\mathbf{x} - \bar{x}\,\mathbf{1} = (-1, 0, 1) = \mathbf{y} - \bar{y}\,\mathbf{1}\) : \(\ r(\mathbf{x}, \mathbf{y}) = 1\).
Gènes 1 et 2 : \(r = 1\). \(\quad\) Gènes 1 et 3 : \(r = -1\), profils opposés.
Forme Corrélation : insensible au niveau et à l’échelle. Seule compte la forme.
Co-expression de gènes
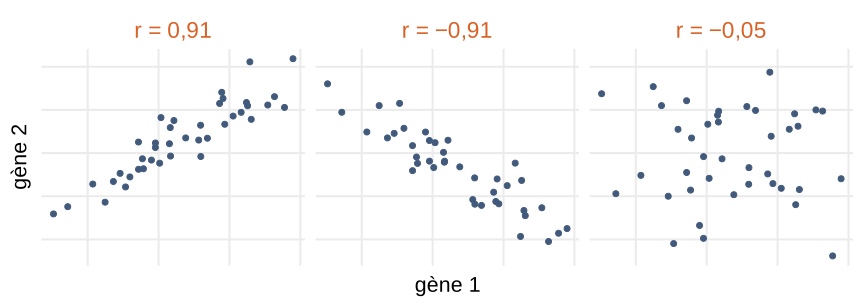
Un point : un échantillon ; en abscisse et en ordonnée, l’expression de deux gènes.
Données simulées.
Matrice des distances
Représentation et distance
Message central Objet biologique → représentation → distance. Il n’existe pas « la » distance entre deux objets biologiques.
Mesures : \(d_2\) après réduction. \(\quad\) Séquences : Hamming.
Ensembles : Jaccard. \(\quad\) Profils : corrélation.
Matrice des distances
Pour \(n\) objets : la matrice \(n \times n\) des distances deux à deux, symétrique et de diagonale nulle.
\[ D = \bigl(d(x_i, x_j)\bigr)_{1 \le i, j \le n}, \qquad d_{ii} = 0, \qquad D^T = D \]
\(D^T = D\) : matrice symétrique, conséquence de l’axiome de symétrie.
Les deux espèces les plus proches
| A | B | C | D | E | |
|---|---|---|---|---|---|
| A | 0 | 3 | 5 | 7 | 10 |
| B | 3 | 0 | 2 | 6 | 9 |
| C | 5 | 2 | 0 | 8 | 11 |
| D | 7 | 6 | 8 | 0 | 4 |
| E | 10 | 9 | 11 | 4 | 0 |
Réponse B et C : 2 différences sur 20, le plus petit terme hors diagonale.